

Bakterial pufakchalar TLR4-TRIF o'qi orqali makrofaglarda virus replikatsiyasini bloklaydi
Sep 27, 2023
Abstrakt
Gram-manfiy bakteriyalar tabiiy ravishda aloqa va patogenezning muhim vositachilari bo'lgan nano o'lchamdagi tashqi membrana pufakchalarini (OMV) chiqaradi. Xost hujayralar tomonidan OMVni qabul qilish tashilgan PAMPlar orqali TLR signalizatsiyasini faollashtiradi. Muhim rezident immun hujayralari sifatida alveolyar makrofaglar havo-to'qima interfeysida joylashgan bo'lib, ular nafas oladigan mikroorganizmlar va zarrachalarga qarshi birinchi himoya chizig'ini tashkil qiladi. Bugungi kunga qadar alveolyar makrofaglar va patogen bakteriyalarning OMVlari o'rtasidagi o'zaro bog'liqlik haqida juda kam narsa ma'lum. OMV va asosiy mexanizmlarga immun javob hali ham tushunarsiz. Bu erda biz birlamchi inson makrofaglarining bakterial pufakchalarga javobini o'rgandik (Legionella pneumophila, Klebsiella pneumoniae, Escherichia coli, Salmonella enterica, Streptococcus pneumoniae) va barcha sinovdan o'tgan pufakchalarda NF-kB faollashuvini kuzatdik. Bundan farqli o'laroq, biz faqat Klebsiella, E.coli va Salmonella OMVlari uchun gripp A virusi replikatsiyasini blokirovka qiluvchi, uzoq muddatli STAT1 fosforillanishi va kuchli Mx1 induksiyasi bilan I IFN signalining differentsial turini tasvirlaymiz. Endotoksinsiz Clear coli OMVs va Polimiksin bilan ishlangan OMVlar uchun OMV tomonidan qo'zg'atilgan antiviral ta'sir kamroq aniqlandi. LPS stimulyatsiyasi bu antiviral holatni taqlid qila olmadi, TRIF nokauti esa uni bekor qildi. Muhimi, OMV bilan davolangan makrofaglardan olingan supernatant alveolyar epiteliya hujayralarida (AEC) antiviral javobni keltirib chiqardi, bu OMV tomonidan induktsiya qilingan hujayralararo aloqani ko'rsatadi. Nihoyat, natijalar birlamchi inson o'pka to'qimalari bilan ex vivo infektsiya modelida tasdiqlangan. Xulosa qilib aytish mumkinki, Klebsiella, E.coli va Salmonella OMVlari makrofaglar, AEClar va o'pka to'qimalarida virus replikatsiyasini kamaytirish uchun TLR4-TRIF signali orqali makrofaglarda virusga qarshi immunitetni keltirib chiqaradi. Ushbu gram-manfiy bakteriyalar OMV orqali o'pkada virusga qarshi immunitetni keltirib chiqaradi, bu bakterial va virusli koinfektsiya natijalariga potentsial hal qiluvchi va katta ta'sir ko'rsatadi.

cistanche o'simlik - immunitet tizimini oshiradi
Kalit so'zlar
Hujayradan tashqari pufakchalar, tashqi membrana pufakchalari, bakterial va virusli koinfektsiya, pnevmoniya, makrofag, alveolyar epiteliya hujayrasi, virusga qarshi tug'ma immunitet
Kirish
Tashqi membrana pufakchalari (OMV) gram-manfiy bakteriyalar tomonidan tabiiy ravishda chiqariladi, diametri 300 nm gacha. Gram-musbat bakteriyalar teng darajada membrana pufakchalarini (MV) chiqarishga qodir. Biogenez natijasida bu ikki qavatli lipid membrana tuzilmalarida periplazmatik tarkibga qo'shimcha ravishda bakterial (tashqi) membrananing asosiy komponentlari, masalan, lipidlar, oqsillar va gram-manfiy bakteriyalar bo'lsa, lipopolisakkaridlar (LPS) mavjud. [1]. Bakterial aloqadagi rolidan tashqari, OMV patogen ta'sir va virulentlik omillarini tashish bilan bog'liq, masalan, Helicobacter pylori dan VacA, Shigella dysenteriae dan Shiga toksini yoki enterohemorragik Escherichia coli dan ClyA [2]. Ushbu OMVlar epiteliya hujayralari va immunitet reaktsiyalarini boshqarishi ko'rsatilgan. OMV yuzasida bakterial endotoksinning boshqa tashilgan patogen bilan bog'liq molekulyar naqshlar (PAMP) mavjudligi ularni immunitet hujayralari uchun kuchli stimulyatorga aylantiradi, chunki ular hali ham tegishli retseptorlari tomonidan tan olinishi mumkin [3]. Tug'ma immun hujayralarida Tolllike retseptorlari (TLR) va Nodga o'xshash retseptorlarning birlashishi yallig'lanishga qarshi va immunoregulyatsion sitokinlarning chiqarilishiga, shu jumladan neytrofillarning to'planishiga yoki epitelial hujayra qatlamlaridagi qattiq birikmalarning buzilishiga olib kelishi mumkin [4]. O'pkaning muhim rezident immun hujayralari turlaridan biri alveolyar makrofaglar (AM) bo'lib, ular alveolalardagi havo-to'qima interfeysida joylashgan. Nafas olingan zarrachalarni yutish orqali AM'lar fagotsitoz va parchalanish orqali mikroorganizmlar va zarrachalarga qarshi birinchi himoya chizig'ini ifodalaydi. Patogen bilan uchrashganda, makrofaglar adaptiv immunitet hujayralariga antigenlarni taqdim etadi va yallig'lanishga qarshi sitokinlarni chiqaradi. Shunday qilib, ular I va II turdagi alveolyar epitelial hujayralar (AEC) va boshqa immun hujayralariga ta'sir qilishi mumkin (Qo'shimcha fayl 1: S1A-rasm). AM'lar hujayra ichidagi signalizatsiya va turli xil immun retseptorlari [5, 6] orqali aniq gen ekspresyon naqshlarini induktsiya qilish uchun bir nechta PAMPlar tomonidan faollashtirilishi mumkin, bu MyD88 yoki TRIF signalizatsiyasiga olib keladi, bu ikkalasi ham o'z navbatida genlarning turli pastki to'plamlarini qo'zg'atadi (Qo'shimcha fayl 1). : S1B-rasm). Bundan tashqari, ular o'pka gomeostazasi va patogenezida boshqa funktsiyalarni bajaradilar, bu ularni o'pka immunitetida markaziy signalizatsiya markazi va orkestratoriga aylantiradi. Gripp viruslari Orthomyxoviridae oilasiga mansub bo'lib, yuqori va pastki nafas yo'llarining infektsiyalarini keltirib chiqaradi, engildan og'ir holatlargacha. Ko'pgina mavsumiy gripp virusi infektsiyalari o'z-o'zidan cheklansa-da, ba'zi bemorlarda pnevmoniya va o'tkir respirator distress sindromi rivojlanadi, bu esa butun dunyo bo'ylab har yili 650000 o'limga olib keladi [7]. Gripp A virusi (IAV) asosan nafas yo'llarining epiteliya hujayralarini yuqtiradi va ularda ko'payadi. Virusli infektsiya naqshni aniqlash retseptorlari (PRR) faollashishiga va bir nechta transkripsiya omillari, ya'ni yadroviy omil kappa B (NF-kB) va interferon tartibga soluvchi omil (IRF)-3/7 orqali signal berishga olib keladi, bu I va III tiplarni keltirib chiqaradi. interferonlarni (IFN) ishlab chiqarish. Bu taniqli IFN javobi, natijada, avto- va parakrin usulda hujayrali "antiviral holat" ni keltirib chiqaradi [8]. Bundan tashqari, infektsiya paytida bir nechta boshqa sitokinlar va kimyokinlar ajralib chiqadi. Bu qattiq tartibga solinadigan xost mudofaa sitokin tarmog'i immun hujayra populyatsiyalarini infektsiya joyiga jalb qiladi va tug'ma va adaptiv immun javoblarni tartibga soladi [9]. Biroq, IAV AM ni ham yuqtirishi mumkin, buning natijasida o'tkir infektsiya paytida AM soni keskin kamayadi, infektsiyani bartaraf etish uchun ularni qayta tiklash kerak. Tug'ma immunitet hujayralarining faollashishi va yallig'lanishga qarshi sitokinlarning sekretsiyasi qo'shimcha tug'ma hujayralarni jalb qilishga, infektsiyani nazorat qilishga va to'qimalarni tiklashni boshlashga olib keladi [10, 11]. Bu erda biz makrofaglarning bakterial hujayradan tashqari pufakchalarga javobini va ularning keyingi IAV infektsiyasiga ta'sirini tahlil qilamiz.

Cistanche qo'shimchasining foydalari - immunitetni qanday mustahkamlash mumkin
Cistanche Enhance Immunity mahsulotlarini ko'rish uchun shu yerni bosing
【Batafsil ma'lumot so'rang】 Email:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
Materiallar va usullar
Kimyoviy moddalar va antikorlar
Hamning F12 muhiti GE Healthcare Europe (Frayburg, Germaniya) dan olingan. RPMI-1640, DMEM, GlutaMAX, Penitsillin/Streptomitsin va FCS Life Technologies (Darmshtadt, Germaniya) dan xarid qilingan. PBS Capricorn Scientific GmbH (Ebsdorfergrund, Germaniya) dan sotib olingan. Opti-MEM Thermo Fisher Scientific kompaniyasidan (Frankfurt, Germaniya) olingan. Phorbol 12-miristat 13-atsetat (PMA) Sigma-Aldrich Chemie (Myunxen, Germaniya) tomonidan yetkazib berildi. LPS (Salmonella Minnesota R595, TLR darajasi) Enzo Life Sciences (Lausen, Shveytsariya) dan olingan. Pam3CSK4 Invivogendan (San-Diego, AQSh) sotib olingan. JAK inhibitori Ruxolitinib Biozol Diagnostics Vertrieb GmbH (Eching, Germaniya) dan olingan. Polimiksin B Merck Millipore (Billerica, AQSh) kompaniyasidan sotib olingan. Antikorlar Abcamdan (Kembrij, Buyuk Britaniya) olingan: Mx1 (ab95926), gripp nukleoproteini (9G8); Hujayra signalizatsiyasi (Kembrij, Buyuk Britaniya): fosfo-IRF-3 (Ser396)(4D4G), fosfo-TBK-1 (Ser172)(D52C2), TBK-1 (61223S), fosfo- STAT1 (Tyr)(58D6), STAT1 (D1K9Y), sichqonchaga qarshi quyon (L27A9), IRAK-1 (4359S), fosfo-p38 (Tr180/Tyr182)(9211S), p38 (9212S); Thermo Fisher Scientific: echkiga qarshi sichqoncha (488 uchun Alexa); ProteinTech: anti-IRF-3 (66670-1) yoki Santa Cruz Biotexnologiyasi (Heidelberg, Germaniya): -aktin (C4), anti-sichqoncha (mIgGkBPHRP, sc-516102). Boshqa barcha qo'llaniladigan kimyoviy moddalar analitik darajada bo'lgan va tijorat manbalaridan olingan.
Bakterial madaniyat va OMV/MV tayyorlash
L. pneumophila shtammi Corby yovvoyi turi bilan avval tavsiflanganidek ishlov berildi [12]. K. pneumoniae (#700721/ MGH78578), E.coli (#25922) va S. enterica serovar Typhimurium (#14028) Amerika turi madaniyati kollektsiyasidan (Rokvill, MD, AQSh) olingan. ClearColi™ BL21 BioCat GmbH (Heidelberg, Germaniya) kompaniyasidan edi. S. pneumoniae D39 Dcps Sven Hammershmidt tomonidan taqdim etilgan. Bakteriyalar bir kechada agar plastinkalarida o'stirildi (MacConkey: Kp, Ec, Sal; LB: Clear coli; qonli agar plitalari: Sp) va keyin suyuq muhitlarni (LB: Kp, Ec, Sal, Clear coli; THY: Sp) emlash uchun foydalanildi. . Bakteriyalar logarifmik fazaning oxirigacha 37 daraja doimiy silkinishda oʻstirildi (MaxQ 6000, Thermo Fisher Scientific, Karlsrue, Germaniya; Sp dan tashqari). Keyin bakterial madaniyatlar uch marta aylantirildi (4500 × g, 15 min, 4 daraja; Multifuge X3R, Thermo Fisher Scientific). Qolgan bakteriyalar 0,22 mkm teshiklar orqali steril filtrlash orqali olib tashlandi. Supernatant 100 kDa molekulyar og'irlikdagi kesish filtrlari (Merck KGaA, Darmshtadt, Germaniya) bilan konsentratsiyalangan va vesikulalar ultratsentrifugalash yoki o'lchamni istisno qilish xromatografiyasi (SEC) bilan tozalangan. Ultratsentrifugalash uchun supernatant 100,000 × g, 3 soat, 4 daraja ultratsentrifugalangan. Olingan OMV/MV pelletini steril PBS bilan yuvgandan so'ng, ultratsentrifugalash takrorlandi va vesikulyar pellet steril PBSda eritildi. Protein tarkibi ishlab chiqaruvchining ko'rsatmalariga (Thermo Fisher Scientific) muvofiq Pirs BCA oqsil tahlili to'plami tomonidan aniqlandi va stimulyatsion tajribalar uchun teng protein miqdori ishlatilgan. SEC uchun supernatant 500 mkL ga konsentrlangan va ishlab chiqaruvchining protokoliga muvofiq 10 ml PBS bilan oldindan yuvilgan original/70 nm Gen 2 ustunlariga (IZON Science LTD, Lion, Fransiya) yuklangan. Vesikulalar steril PBS yordamida elutsiya qilindi va 500 mkl fraktsiyalar yig'ildi. Vesikulalar nano-oqim sitometriyasi (nFCM; NanoFCM Co., Ltd, Nottingem, Buyuk Britaniya) tomonidan aniqlangan 7-12 fraktsiyalarda elutsiya qilindi. Birlashtirilgan pufakchali fraktsiyalar molekulyar og'irlikdagi kesish filtrlari (Merck KGaA) yordamida 200-400 mL gacha konsentratsiyalangan. Barcha preparatlarning pufakchalar kontsentratsiyasi nFCM tomonidan aniqlandi va stimulyatsion tajribalar uchun teng miqdordagi pufakchalar ishlatilgan. Ikkala tozalash usulining ham OMV/MV preparati bakteriyalarni ifloslantiruvchi moddalarga yopishtirish va -20 darajada alikvotlarda saqlash orqali tekshirildi.
NFC
nFCM uchun 488 nm lazer bilan jihozlangan Nano analizator (NanoFCM Co., Ltd, Nottingem, Buyuk Britaniya) 200 nm polistirol boncuklari (NanoFCM Co.) bilan belgilangan konsentratsiyali kalibrlangan. 2,08 × 10 ^ 8 zarralar / ml va shuningdek, zarrachalar kontsentratsiyasi uchun mos yozuvlar sifatida ishlatiladi. Bundan tashqari, to'rt xil o'lchamdagi monodispers silika boncuklar (NanoFCM Co.) pufakchalar o'lchamini kalibrlash uchun o'lchamga mos yozuvlar standarti sifatida ishlatilgan. Yangi filtrlangan (0,1 mikron) 1 × PBS fon signali sifatida tahlil qilindi va boshqa o'lchovlardan ayirildi. Har bir tarqatish gistogrammasi yoki nuqta chizmasi 1 kPa namuna bosimi bilan 1 daqiqa davomida to'plangan ma'lumotlardan olingan. OMV namunalari filtrlangan (0,1 mkm) 1×PBS bilan suyultirildi, natijada zarrachalar soni optimal diapazonda 2500–12000 hodisaga erishildi. Zarrachalar konsentratsiyasi va hajmi taqsimoti nFCM dasturi (NF Kasb V1.08) yordamida hisoblab chiqilgan.
Transmissiya elektron mikroskopiyasi (TEM)
Uglerod bilan qoplangan mis to'rlar (400 mesh) porlashni tushirish orqali gidrofilizatsiya qilindi (PELCO easiGlow, Ted Pella, AQSh). Besh mL namunalar gidrofillangan panjaralarga qo'llanildi va ikki marta distillangan suv bilan qisqa yuvish bosqichidan so'ng 2% (w/v) uranil asetat bilan bo'yaldi. Namunalar JEOL JEM{3}} transmissiya elektron mikroskopi yordamida 120 kV tezlanish kuchlanishidan foydalangan holda tahlil qilindi. Tasvirlar F214 FastScan CCD kamerasi (TVIPS, Gauting, Germaniya) yordamida olingan.

cistanche tubulosa - immunitet tizimini yaxshilaydi
Hujayra madaniyati
Inson hujayra liniyalari (THP-1, A549, BEAS2B, Calu-3, HCC827) American Type Culture Collectiondan olingan. Madin-Darby Canine Buyrak II hujayralari (MDCK II) ECACC-Sigma-Aldrichdan (Darmshtadt, Germaniya) sotib olingan. THP-1 Dual™ (Dual) va THP-1 Dual™ TRIF-KO (TRIF−/−) hujayralar Invivogen Europe (Tuluza, Fransiya) kompaniyasidan olingan. Hujayralar 1 mM natriy piruvat, 2 mM glutamin, shuningdek, hujayra madaniyati sharoitida 10% qizdirilgan FCS bilan to'ldirilgan Ham F12, DMEM yoki RPMI-1640 da o'stirildi. THP-1 Dual™ xujayralari 1% Penitsillin/Streptomitsin, 2 mM glutamin, 10% issiqlik bilan inaktivlangan FCS, 100 mkg/ml Normocin™ va 25 mM HEPES buferi bilan to‘ldirilgan RPMI-1640 da yetishtirildi. THP -1, Dual va TRIF-/− hujayralar 24 soat davomida 20 nM PMA qo'shilishi bilan makrofagga o'xshash hujayralarda farqlandi.
Mx1 ni SparQ vektoriga klonlash
Mx1 kodlash ketma-ketligi ishlab chiqaruvchining ko'rsatmalariga muvofiq Phusion High-Fidelity DNK Polimerase (New England Biolabs, Ipswich, AQSH) yordamida Phusion PCR orqali THP{1}} cDNK dan yaratilgan. HA kodlash ketma-ketligini teskari primerga birlashtirish orqali HAtag qo'shildi (ma'nosi: 5′-atcggaTTCGAAATGGTTGTT TCCGAAGTGGAC-3', antisense: 5'-tccgatGCGGCC GCTTAAGCGTAATCTGGAACATCGTATGGGGAGG}).{GAACATCGTATGGGGGAG}). PCR fragmenti hamda SparQ vektori (Addgene, Watertown, AQSH) BstbI va NotI cheklash fermentlari (Thermo Fisher Scientific) bilan hazm qilindi va SparQ vektoriga T4 DNK Ligase (New England Biolabs) bilan bog'landi.
HEK293T hujayralarining transfeksiyasi va Lentivirus ishlab chiqarilishi
HEK293T xujayralari Opti-MEMda suyultirilgan SparQ vektori, Mx1 ketma-ketligi va GFP ketma-ketligi, psPAX2 virusli qadoqlash vektori va pVSV-G konvert plazmidi (Addgene) bilan Lipofektamin 2000 (Thermo) bilan transfektsiya qilindi. Fisher Scientific) ishlab chiqaruvchining protokoliga muvofiq. Lentivirus ishlab chiqarildi va virus o'z ichiga olgan supernatant har kuni 72 soat davomida yig'ildi. Supernatant 0,45 mkm filtr yordamida filtrlandi va THP{10}} hujayralar transduktsiya qilindi (pastga qarang). Mx1 ketma-ketligi bo'lmagan bo'sh SparQ vektori tegishli boshqaruv hujayra chizig'ini (VC{12}}vektor nazorati) yaratish uchun hujayralarni transduksiya qilish uchun ishlatilgan.
THP‑1 hujayralarining transduktsiyasi
THP{0}} hujayralari HEK293T hujayra madaniyatining filtrlangan supernatantidan lentivirus bilan transduktsiya qilindi (yuqoriga qarang). Transduksiya samaradorligini oshirish uchun polibrene (4 µg/ml, Sigma-Aldrich) qo‘shildi. Hujayralar olti kungacha inkubatsiya qilindi. GFP-musbat hujayralar oqim sitometriyasi bo'yicha saralangan.
BDMlarni izolyatsiyasi va differensiatsiyasi
Sog'lom donorlardan olingan inson monotsitlari periferik qon mononuklear hujayralaridan magnit CD14 musbat tanlovi bilan ajratilgan va yuqorida tavsiflanganidek, 1% inson AB sarumi ishtirokida qondan olingan makrofaglarga (BDM) ajratilgan.
Makrofaglarning OMV/MV stimulyatsiyasi
Birlamchi inson makrofaglari yoki differensiallangan THP{0}} hujayralari tozalangan OMV/MV (ultratsentrifugalash orqali tozalangan pufakchalar uchun har biri 1 mkg/mL va SEC bilan tozalangan uchun 1,{3}} koʻp vesikulalar (MOV) bilan inkubatsiya qilindi. pufakchalar) to'liq muhitda 20 soatgacha. Qo'shimcha inhibitor qo'llanilishi vesikulyar davolashdan 1 soat oldin amalga oshirildi. Te-stimulyatsiya qilingan makrofaglar oqsil yoki RNK izolyatsiyasi yoki keyingi infektsiya tajribalari uchun ishlatilgan. Olingan sitokin o'z ichiga olgan supernatant Elishay yoki LDH tahlili uchun ishlatilgan yoki steril filtrlangan va epiteliya hujayralarini stimulyatsiya qilish uchun ishlatilgan.
Virusni tozalash va virusni titrlash
Virusni tozalash va virusni titrlash MDCK II hujayralarida ilgari tasvirlanganidek amalga oshirildi [14]. Virus titri avval tavsiflanganidek blyashka tahlili bilan aniqlandi [15]. Qisqacha aytganda, qo'shilgan MDCK II hujayralari ketma-ket suyultirilgan virus yoki to'qima supernatanti (FCSsiz MDCK II madaniyat muhitida) bilan infektsiyalangan. Virus 37 daraja haroratda 1 soat davomida hujayralarga adsorbsiyalanishiga ruxsat berildi. O'nta, emlash yangi muhit bilan almashtirildi (1 ug/ml TPCK bilan ishlov berilgan tripsin (IAV uchun) va 1% Avicel® PH-101 (Sigma-Aldrich) bilan to'ldirilgan). MDCK II hujayralari kristalli binafsha rang bilan bo'yalgan yoki virus bilan zararlangan hujayralar birlamchi antikor (1:2,000) (sichqoncha grippiga qarshi A nukleoproteini, MCA400, Bio-Rad, Germaniya) va ikkilamchi antikor bilan bo'yalgan. 1:4,000) (Goat Anti-Sichqoncha IgGHRP, 170–6516, Bio-Rad, Germaniya) blyashka tahlili uchun. Blyashkalar qo'lda hisoblangan va har bir ml uchun blyashka hosil qiluvchi birliklar (pfu) sifatida ifodalangan.

Cistanche erkaklar uchun foydalari-immun tizimini mustahkamlaydi
Virus infeksiyasi
Bakterial pufakchalar yoki sitokin o'z ichiga olgan supernatant bilan 20 soat oldindan stimulyatsiya qilingandan so'ng, hujayralar IAV yoki vesikulyar stomatit virusi (VSV) bilan kasallangan. Makrofaglar H1N1 (A/WSN/33) yoki VSV bilan kasallangan, epiteliya hujayralari esa FCSsiz yangi muhitda H1N1 (A/Gamburg/2009/PDM) bilan kasallangan. 1 soatlik emlashdan so'ng, bepul virus olib tashlandi va vosita IAV uchun TPCK-tripsin o'z ichiga olgan vosita yoki VSV uchun bo'sh muhit bilan almashtirildi. Multisiklik replikatsiyaga imkon berish uchun hujayralar 48 soatgacha inkubatsiya qilindi.
Inson PCLSni tayyorlash
O'pka to'qimasi Hannover tibbiyot maktabida (MHH, Hannover, Germaniya) o'pka saratoni tufayli lob rezektsiyasidan o'tgan bemorlardan olingan. Tajribalar uchun faqat o'pkaning makroskopik va mikroskopik jihatdan kasallikdan holi bo'lgan qismlaridan olingan to'qimalar ishlatilgan. Insonning aniq kesilgan o'pka bo'laklari (PCLS) ilgari tasvirlanganidek tayyorlangan [16]. Har bir quduqqa ikkita toʻqima boʻlagi 24-quduq plastinkasida suv ostida boʻlgan sharoitda (DMEM/F12 1% Penitsillin/Streptomitsin bilan toʻldirilgan) 37 daraja haroratda, 5% CO2 kechada yetishtirildi.
PCLS ning IAV infektsiyasi
PCLS L. pneumophila yoki K. pneumoniae dan tozalangan 1 µg/ml OMV 20 soat davomida 1% Penitsillin/Streptomitsin bilan to‘ldirilgan DMEM/F12 bilan suyultirilgan 37 darajada , 5% CO2 bilan rag‘batlantirildi. Media olib tashlandi va PCLS 250 µL gripp virusi A/California/04/2009(H1N1pdm) ichida 25,{8}} pfu/quyuk bilan emlandi. PCLS 35 darajada inkubatsiya qilindi va bir hil virus infektsiyasini ta'minlash uchun inokulyatsiya paytida har 15 daqiqada silkitildi. Shundan so'ng, emlash tashlanadi va uning o'rniga DMEM/F12 1% Penitsillin/Streptomitsin qo'shiladi. 48 soat davomida inkubatsiyadan so'ng, supernatant virusni aniqlash, LDH chiqarilishi va sitokin miqdorini aniqlash uchun yig'ildi. Sitokin o'lchovlari uchun namunalar 0,2% proteaz inhibitori kokteyli (P1860, Sigma-Aldrich, Myunxen, Germaniya) bilan to'ldirildi va tahlil qilinmaguncha 80 darajada saqlanadi. PCLS muzlatib qo'yildi va RNK tozalanmaguncha 80 darajada saqlangan, ilgari tasvirlangan [17].
LDH
LDH ajralib chiqish tahlili ishlab chiqaruvchining ko'rsatmalariga muvofiq Roche (Mannheim, Germaniya) yoki Cytotoxicity Detection KitPLUS (LDH) (Roche, Merck) dan olingan Pierce™ LDH sitotoksisite tahlili to'plami yordamida amalga oshirildi. Absorbans infinite F200Pro (Tecan, Mannedorf, Shveytsariya) mikroplata o'quvchi yordamida o'lchandi.
ELISA
CXCL8/IL-8, CXCL10/IP-10 va IL-1 sitokinlari ishlab chiqaruvchining ma'lumotlariga ko'ra, sotuvda mavjud bo'lgan ELISA to'plamlari (R&D Systems, Wiesbaden, Germaniya) yordamida hujayrasiz supernatantdan aniqlangan. ko'rsatmalar.
QUANTI‑blue™ tahlili
THP-1 Dual™ va tegishli TRIF−/− hujayralaridan olingan hujayra madaniyati supernatantida SEAPning reportyor faolligini aniqlash uchun ishlab chiqaruvchining protokoliga muvofiq QUANTI-Blue™ tahlili o‘tkazildi. Qisqacha aytganda, hujayra madaniyati supernatant hujayralarni OMVlar bilan stimulyatsiya qilgandan so'ng to'plangan. Birinchidan, QUANTI-Blue™ eritmasi va hujayra madaniyatining supernatanti yog 'pastki 96-quduqli plastinkaga yuborildi. 150 daqiqa davomida 37 daraja inkubatsiyadan so'ng, 630 nm optik zichlik cheksiz F200Pro mikroplata o'quvchida aniqlandi.
QUANTI‑luc™ tahlili
THP{0}} Dual™ va tegishli TRIF−/− hujayralaridan olingan hujayra madaniyati supernatantida Lucia lusiferazasining reportyor faolligini aniqlash uchun ishlab chiqaruvchining protokoliga muvofiq QUANTI-Luc™ tahlili o‘tkazildi. Qisqacha aytganda, hujayra madaniyati supernatanti oq yog 'pastki 96-quduq plastinkasiga (BRAND GmbH & Co. KG, Wertheim, Germaniya) yuborildi. QUANTI-Luc ™ tahlil eritmasi qo'shildi va lyuminesans o'lchovi 0,1 s o'qish vaqti bilan cheksiz F200Pro mikroplyonka o'quvchisida darhol amalga oshirildi.
Gʻarbiy blot
Protein ifodasi yoki fosforillanishini aniqlash uchun Western Blot avval tasvirlanganidek amalga oshirildi [18].
RNK tayyorlash va real vaqtda PCR
Gen ekspressiyasini tahlil qilish uchun RNK izolyatsiyasi fenol-xloroform ekstraktsiyasi orqali amalga oshirildi va yuqorida tavsiflanganidek teskari transkripsiya qilindi [12]. Keyin real vaqtda miqdoriy PCR ViiA7 (Thermo Fisher Scientific) da Luna Universal qPCR Master Mix (New England BioLabs) va maxsus primer juftlari bilan amalga oshirildi. 2−DCT usuli [19] yordamida x-katlama induksiyasi hisoblab chiqildi va natijalar mos keladigan nazorat hujayralariga normallashtirildi. 18S: oldinga siljish: 5′-GACTCTTTTCGAGGCCCTGTA{{10}', rev: 5′-CACCAGACTTGCCCCTCCAAT-3′ CXCL8: toʻgʻridan-toʻgʻri: 5′-ACTGAGAGTGATTGAGAG TGGAC-3′′, rev:AACCCCTTC5G {20}}' IFI44: oldinga siljish: 5′-TATCCAGACAGAGCAGCTACC-3′, rev: 5′-ATAGAGAAGGCTAAGCCGCTTC-3′ IFIT1: oldinga siljish: 5′-ATGCAGGAAGAACATGACAACC-3 ′-TCTGGACACTCCATTCTATAGCG-3' IFNA1: toʻgʻridan-toʻgʻri: 5′-ACAGGAGGACCTTGATGCTC-3′, rev: 5′-TCTGCTGGATCAGCTCATGG-3′ IFNB: toʻgʻridan-toʻgʻri: 5′-CCATGAC4{38}} , rev: 5′-TGTCCTTGAGGCAGTATTCAAG-3′ IL1B: toʻgʻridan-toʻgʻri: 5′-AGCTCGCCAGTGAAATGATGG-3′, rev: 5′-CAGGTCCTGGAAGGAGCACTTC-3′w IL:CCGAATCAGdfw: 58}}′, rev: 5′-CACCATTTCTCCAGGGGCAT-3’ Mx1: toʻgʻridan-toʻgʻri: 5′-GGGCTTTGGAATTCTGTGGC-3′, rev: 5′-CCTTGGAATGGTGGCTGGAT{{68}w}d: fwd: NP5' -GAAATTTCAAACAGCTGCACAAAG -3′, rev: 5′-AATATGAGTGCAGACCGTGC-3′ RPS18: toʻgʻridan-toʻgʻri: 5'-GCGGCGGAAAATAGCCTTTG-3′, rev: 5′-GATCACCATC}'1}'
Immunofluoresans
THP{0}} xujayralari 20 nM PMA qo‘shilishi bilan qopqoqlarda farqlandi va 20 soat davomida OMV/MVs bilan inkubatsiya qilindi. Keyinchalik hujayralar H1N1 (A/WSN/33; infektsiyaning ko'pligi (MOI) 0,1) bilan 4 soat davomida infektsiyalangan. 3% paraformaldegid bilan 15 daqiqa mahkamlangandan so'ng, slaydlar uch marta PBS bilan yuvildi va TBSda 0,2% triton X-100 bilan o'tkazuvchanlashtirildi (10 daqiqa, xona harorati). Bloklangandan so'ng (TBSda 1% BSA/0,2% triton X-100), hujayralar -NP antikori (1:250, blokirovka qiluvchi eritmada) bilan inkubatsiya qilindi. Ikkilamchi antikor (1:1000) DAPI (1:2000) bilan birgalikda 1 soat qorong'ilikda inkubatsiya qilindi. O'rnatilgan qoplamalar floresan mikroskopda tahlil qilindi (AxioVision, Zeiss, Jena, Germaniya).
Axloqiy bayonot
Inson o'pka to'qimalarining bo'laklari bilan o'tkazilgan tajribalar Gannover tibbiyot maktabining (MHH, Hannover, Germaniya) axloq qo'mitasi tomonidan tasdiqlangan va Jahon Tibbiyot Assotsiatsiyasining axloq kodeksiga (2701-2015 raqami) mos keladi. Barcha bemorlar yoki ularning yaqin qarindoshlari tadqiqot uchun o'pka to'qimasidan foydalanishga yozma rozilik berishdi. Barcha qon donorlari xabardor qilingan yozma rozilik berishdi (Etikani tasdiqlash raqami: 161/17).
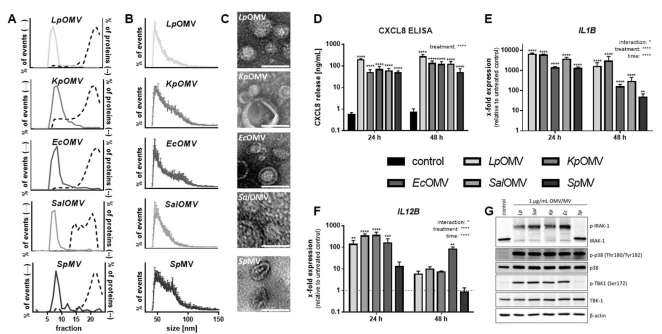
1-rasm Bakteriya pufakchalarining xarakteristikasi va inson makrofaglaridagi javob. Turli bakterial supernatantlardan (Legionella pneumophila (Lp), Klebsiella pneumoniae (Kp), Escherichia coli (Ec), Salmonella enterica serovar Typhimurium (Saloccusia) va Streptmonocea (St. S.) ). Har bir fraksiyadagi vesikula kontsentratsiyasi nano-oqim sitometriyasi (nFCM) bilan aniqlandi va oqsillar BCA bilan aniqlandi. B Tozalangan OMV/MV larning vesikula o'lchami taqsimoti NFC tomonidan aniqlandi. Tozalangan OMV/MVlarning C TEM tasvirlari. Masshtab satri=50 nm. D-G BDMs turli bakteriyalardan OMVs/MVs (har biri 1 mkg/ml) bilan rag'batlantirildi yoki 48 soatgacha nazorat qilish uchun davolanmasdan qoldirildi. D CXCL8 chiqarilishi Elishay tomonidan aniqlangan va ng/ml da tasvirlangan. IL1B (E) va IL12B (F) ifodasi qPCR tomonidan aniqlandi, natijalar RPS18 ga normallashtirildi va ishlov berilmagan nazorat hujayralariga nisbatan tasvirlangan. G Bakterial pufakchalar bilan 1 soat inkubatsiyadan keyin IRAK-1, p38 va TBK-1 ning ekspressiyasi va fosforlanishi Western Blot tomonidan aniqlandi. To'rtta biologik mustaqil replikatsiyaning vakillik natijalari ko'rsatilgan. Barlar uchta (B) dan to'rt (D-F) gacha mustaqil tajribalar + SEM o'rtacha qiymatlarini ifodalaydi. Statistika: 2-yo'l ANOVA (DF); *p<0.05, **p<0.01, ***p<0.001, ****p<0.0001; ns=not significant; n=3–4
Statistika
Ma'lumotlar kamida uchta biologik mustaqil tajriba uchun o'rtacha qiymatlar + SEM sifatida ko'rsatilgan. Prizma 6.07 (GraphPad, La Jolla, AQSH) ishlatilgan. Bir yoki ikki tomonlama ANOVA testlari juftlashtirilmagan namunalar uchun o'tkazildi. P-qiymatlari 0,05 dan kam yoki unga teng statistik ahamiyatga ega deb hisoblanadi. Agar boshqacha ko'rsatilmagan bo'lsa, testlar mos keladigan nazoratga (*) nisbatan o'tkazildi.
Ma'lumotlar va materiallarning mavjudligi
Ushbu tadqiqot davomida yaratilgan yoki tahlil qilingan barcha ma'lumotlar ushbu maqolaga va uning qo'shimcha fayliga kiritilgan.
Natijalar
OMV / MV tomonidan makrofaglarning yallig'lanishga qarshi faollashuvi
Inson qonidan olingan birlamchi makrofaglarning (BDM) turli bakteriyalar, Legionella pneumophila (Lp), Klebsiella pneumoniae (Kp), Escherichia coli (Ec), Salmonella enterica serovar Typhimurium (S) pufakchalaridan OMVs/MV larga tug'ma immun javobini tekshirish uchun ) va Streptococcus pneumoniae (Sp) o'lchamli istisno xromatografiyasi (SEC) orqali ajratilgan. Fraksiyalar nano-oqim sitometriyasi (nFCM) va BCA tomonidan oqsillar mavjudligi uchun pufakchalar soni uchun tahlil qilindi (1A-rasm). 7-12 fraksiyalardan vesikulalar birlashtirilib, tajribalar uchun ishlatilgan. OMVs/MVlar solishtirma oʻlchamdagi taqsimot profiliga ega edi (1B-rasm), oʻrtacha oʻlchamda farq qilmadi (1-qoʻshimcha fayl: S2A-rasm), teng darajada konsentratsiyalangan (1-qoʻshimcha fayl: S2B-rasm) va transmissiya elektroni orqali ingl. mikroskop (TEM; 1C-rasm). BDM'lar OMVs/MVs bilan 48 soatgacha rag'batlantirildi, bu turli bakteriyalarning teng vesikul konsentrasiyalariga mos keladi (Qo'shimcha fayl 1: S2C-rasm). BDMlarni pufakchalar bilan inkubatsiya qilish sitotoksik emas edi (Qo'shimcha fayl 1: S2D-rasm). OMVs/MVs CXCL8 ifodasini va makrofaglardan chiqarilishini keng miqyosda qo'zg'atdi (Qo'shimcha fayl 1: rasm. S3A va 1D), IL1B va IL12B mRNK induksiyasi esa vaqt va turga bog'liq edi (1E+F-rasm). IL{25}} chiqishi bakterial pufakchalar ajratilgan turga bog'liq edi (Qo'shimcha fayl 1: S3B-rasm). 1 soatlik pufakchalar inkubatsiyasidan keyin p38 fosforillanishi BDMlarda solishtirish mumkin bo'lsa-da, faqat gramm-manfiy bakteriyalar natijasida IRAK-1 parchalanishi va TBK-1 fosforillanishi natijasida olingan OMVlar, gram-musbatlardan MVlar emas (1-rasm). 1G va 1-qo'shimcha fayl: S4A-D).
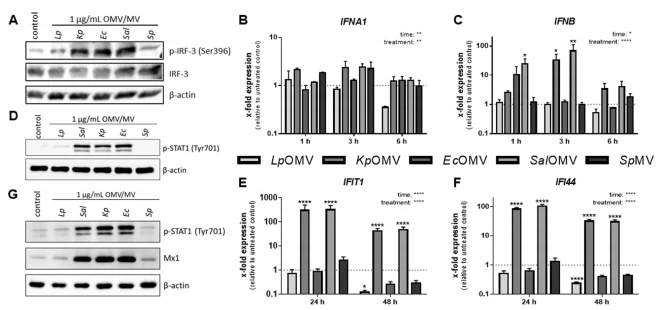
2-rasm Bakterial hujayradan tashqari pufakchalar BDMlarda I tip interferon javobini faollashtiradi. BDM'lar turli bakteriyalardan OMV/MV (har biri 1 mkg/ml) bilan rag'batlantirildi yoki nazorat sifatida ishlov berilmagan. IRF-3 ning fosforlanishi va ifodasi Western Blot tomonidan OMV/MV inkubatsiyasidan 1 soat keyin aniqlandi. Uchta biologik mustaqil replikatsiyaning vakillik natijasi ko'rsatilgan. IFNA1 (B), IFNB (C), IFIT1 (E) va IFI44 (F) ning ifodasi qPCR bilan o'lchandi, natijalar RPS18 ga normallashtirildi va ishlov berilmagan nazorat hujayralariga nisbatan tasvirlangan. D STAT1 ning fosforillanishi Western Blot tomonidan 2 soatlik OMV/MV stimulyatsiyasidan keyin aniqlandi. To'rtta biologik mustaqil replikatsiyaning vakili natijasi ko'rsatilgan. G STAT1 ning fosforillanishi va Mx1 ifodasi 20 soatlik bakterial pufakchalar stimulyatsiyasidan keyin Western Blot tomonidan aniqlandi. To'rtta biologik mustaqil replikatsiyaning vakillik natijalari tasvirlangan. Barlar to'rtta mustaqil tajribadan olingan o'rtacha qiymatlarni + SEMni ifodalaydi. Statistika: 2-yo'l ANOVA; *p<0.05, **p<0.01, ****p<0.0001; n=4
NF-kB va AP-1 va ularning quyi oqim maqsadlarini faollashtirishdan tashqari, PRR signalizatsiyasi IRFlarning faollashishiga olib kelishi mumkin. Shunday qilib, IRF-3 ning fosforlanishi aniqlandi. Kp/Ec/SalOMVs BDMlarda IRF{3}} fosforillanishini oshirdi (2A-rasm), natijada IFN I ifodasi (2B+C-rasm), STAT1 ning quyi oqimida fosforillanishi (2D-rasm va 1-qo‘shimcha fayl: S4E) va interferon bilan stimulyatsiya qilingan genlarning induksiyasi (ISGs; IFIT1, IFI44 va Mx1; 2E-G-rasm). Fosforlanish hodisalari odatda qisqa muddatli va immun signalizatsiya kaskadlarini yoqish va yoqishda muhim rol o'ynashi ma'lum bo'lganligi sababli, STAT1 fosforillanishi Kp/Ec/SalOMV qo'shilgandan 20 soat o'tgach ham tekshirildi (2G-rasm va 1-qo'shimcha fayl: S4F+G). Tajribalar shuni ko'rsatdiki, OMVlar nafaqat makrofaglarda yallig'lanishga qarshi signalizatsiyani faollashtiradi, balki virusga qarshi signalizatsiyani ham keltirib chiqaradi.
OMV pre-inkubatsiyasi makrofaglarda IAV replikatsiyasini o'zgartiradi
Mx1 makrofaglarni Kp/Ec/SalOMV bilan davolashda ifodalangan IAV replikatsiyasini inhibe qiluvchi taniqli virusga qarshi omil [20]. Shuning uchun biz OMVni oldindan davolash virusli replikatsiyani o'zgartiradi, deb taxmin qildik. THP-1 hujayralarida IAV infektsiyasi bo'yicha tajribalar o'rnatildi, ular mRNK va oqsil darajalarida Kp/Ec/SalOMV bilan davolashda Mx1 ning o'xshash darajasini ifodalaydi (Qo'shimcha fayl 1: S5A+B-rasm) va STAT1 fosforillanishini keltirib chiqaradi. , umumiy STAT1 oqsili barqaror bo'lib qoladi (Qo'shimcha fayl 1: rasm. S5C), H1N1 shtammi (A/WSN/33) bilan makrofaglarda infektsiyalanadi va ko'payadi [21]. THP{18}} hujayralarining LpOMV/SpMV bilan oldindan stimulyatsiyasi infektsiyadan keyingi 24 soat ichida IAV replikatsiyasini (pi) yuqtirgan nazoratga (--) nisbatan oshirdi, Mx1-induktsiya OMV (Kp) bilan oldindan davolash. /Ec/Sal) IAV replikatsiyasini blokladi (3A-rasm). TLR2/1 agonisti Pam3CSK4 oldindan ishlov berish LpOMV/SpMV bilan kuzatilgan ta'sirga taqlid qilishi mumkin bo'lsa-da, ularning ikkalasi ham TLR2/1 orqali signal berishi ma'lum [12, 22, 23], TLR4 agonisti sifatida eriydigan LPS Kp/Ec ni takrorlamadi. /SalOMV effekti (Qo'shimcha fayl 1: S5D-rasm). Oldindan davolashdan so'ng IAV yukidagi farqlar virusli nukleoproteinga (NP) qarshi immunofluoresans bo'yash orqali ham kuzatilishi mumkin (3B-rasm). Kp/Ec/SalOMV-dan oldingi davolash IAV replikatsiyasini blokladi va NP-musbat hudud sezilarli darajada kamaydi (3C-rasm). Buni LpOMV/SpMV bilan oldindan davolashdan keyin kuzatish mumkin emas edi. Mx1 induksiyasi kuzatilgan bloklangan IAV replikatsiyasi uchun etarli yoki yo‘qligini tekshirish uchun Mx1 OMV oldingi stimulyatsiyasiga taqlid qilish uchun THP-1 makrofaglarida barqaror ravishda haddan tashqari ifodalangan (jinsiy) (Qo‘shimcha fayl 1: S5E-rasm). Mx1oex hujayralarining IAV infektsiyasi bo'sh vektor nazorati (VC) (3E-rasm) bilan solishtirganda immunofluoresan NP-musbat maydonning 4 h pi (3D-rasm) qisqarishiga va virus replikatsiyasining 6 soat pi ga kamayishiga olib keldi (3E-rasm). OMV prestimulyatsiyasi bilan solishtirilgan darajada (3A-rasm). Xulosa qilib aytganda, Kp/Ec/SalOMV klassik yallig'lanishga qarshi makrofaglarni faollashtirdi va antiviral genlarni keltirib chiqardi, natijada IFN- / retseptorlari (IFNAR) faollashishi, STAT1 ning quyi oqimi fosforlanishi va IAV replikatsiyasiga bevosita xalaqit berishi mumkin bo'lgan Mx1 ifodasi ( 4A-rasm). JAK/STAT signalizatsiyasining antiviral javobning kuzatilgan induktsiyasi uchun ahamiyatini tasdiqlash uchun vesikulyar stimulyatsiyadan oldin JAK inhibitori (JAKi) qo'llanildi. JAK inhibisyonu Kp/SalOMV tomonidan qo'zg'atilgan CXCL8 ifodasini o'zgartirmadi (4B-rasm), lekin IAV infektsiyasida ham mRNAdagi Mx1 (4C-rasm) va oqsil darajasini sezilarli darajada kamaytirdi (4D-rasm va 1-qo'shimcha fayl: S6A). Shunga ko'ra, JAKi OMV tomonidan qo'zg'atilgan virusli replikatsiya blokadasini o'zgartirdi (4E-rasm).

3-rasm Mx{1}}induktsiyali OMVlar gripp A virusining THP-1 hujayralarida replikatsiyasini bloklaydi. Gripp A virusining differentsiatsiyalangan THP-1 hujayralarida replikatsiyasi. Hujayralar OMV/MV (har biri 1 mkg/ml) bilan oldindan ishlov berilgan yoki nazorat qilish uchun ishlov berilmagan (-). 20 soat oldingi davolashdan so‘ng hujayralar 24 va 48 soat davomida A/ WSN/33(H1N1) (MOI 0.001) bilan yuqtirildi. IAV replikatsiyasi 18S ga normallashtirilgan IAV-NP ga qarshi qPCR tomonidan aniqlandi. Uchdan beshtagacha mustaqil tajribaning o'rtacha qiymatlari±SEM ko'rsatilgan. B Differensiallangan THP-1 hujayralari OMV/MV (har biri 1 mkg/ml) bilan oldindan ishlov berilgan yoki nazorat qilish uchun ishlov berilmagan (-). 20 soatlik inkubatsiyadan so'ng hujayralar 4 soat davomida A / WSN / 33 (H1N1) (MOI 0.1) bilan infektsiyalangan. Fiksatsiyadan so'ng hujayralar -influenza NP antikori (sariq) va DAPI (ko'k) bilan bo'yalgan. To'rtta biologik mustaqil eksperimentning vakili natijasi ko'rsatilgan. C (B) dan NP musbat (NP+) maydoni miqdorini aniqlash. Barlar to'rtta mustaqil eksperiment + SEMning o'rtacha qiymatlarini ifodalaydi. Mx1 (Mx1oex) va bo'sh vektor nazorati (VC) hujayralarini barqaror ravishda haddan tashqari ifodalovchi D THP{31}} hujayralari 4 soat davomida A/WSN/33(H1N1) (MOI 0.1) gripp virusi bilan zararlangan. Fiksatsiyadan va -influenza NP bilan immunofluoresans bilan bo'yalgandan so'ng, NP + maydoni miqdori aniqlandi va VC hujayralariga nisbatan tasvirlangan. Barlar to'rtta mustaqil tajriba + SEMning o'rtacha qiymatlarini ko'rsatadi. E Mx1oex va VC hujayralari 6 soat davomida A/WSN/33(H1N1) (MOI 0.001) bilan yuqtirildi. Virusli replikatsiya blyashka tahlili bilan aniqlandi va natijalar har ml uchun blyashka hosil qiluvchi birliklar (pfu) sifatida tasvirlangan. Barlar to'rtta mustaqil tajribaning o'rtacha qiymatlari + SEM ni ifodalaydi. Statistika: 2-yo'l ANOVA (A), 1-yo'l ANOVA (C), juftlashtirilmagan t-test (D+E); *p<0.05, **p<0.01, ****p<0.0001; n=3–5
OMVlarga antiviral javob TLR4‑TRIFga bog'liq
Ishlatilgan PRRni aniqlash uchun tijorat immun agonistlari OMVlarni taqlid qilish uchun yakka o'zi yoki LPS bilan birgalikda qo'llanilgan. Shu bilan birga, KpOMVlar bilan hech qanday aks ettirilgan Mx1 induksiyasi kuzatilmadi (Qo'shimcha fayl 1: S7-rasm), bu ularning ligand tarkibi yoki PRRlarga fazoviy taqdimoti tufayli OMVlar tomonidan makrofaglarning differentsial va uzoq muddatli faollashuvini ko'rsatadi. Qo'shimcha immun retseptorlari NF-kB- va IRF signallari uchun THP{3}} reportyor hujayralari tomonidan baholandi (5A-rasm). KpOMV bilan davolashda THP{8}} hujayralari Mx1 oqsilining sezilarli darajada oshganligini ko'rsatdi (5B-rasm va 1-qo'shimcha fayl: S6B), bu TRIF yetishmaydigan (TRIF−/−) THP-1 hujayralarida ( 5B-rasm va 1-qo'shimcha fayl: S6B). Xuddi shu narsa IRF muxbiri uchun kuzatildi (5C-rasm), NF-kB reportyor faollashuvi va CXCL8 induktsiyasi stimulyatsiya qilinganda THP-1 va TRIF−/− hujayralarida yuqori bo'lgan (5D+E-rasm). STATga bog'liq IFIT1, IFI44 va Mx1 gen ifodasi THP-1 reportyor hujayralarida KpOMV stimulyatsiyasi natijasida paydo bo'ldi (5E-rasm), bir xil darajada ogohlantirilgan TRIF−/− hujayralarida esa sezilarli darajada kamaydi (5E-rasm). Oldindan stimulyatsiyadan so'ng qo'shimcha IAV infektsiyasi virus replikatsiyasining pasayishiga olib keldi, TRIFni o'chirish esa IAV replikatsiyasini qutqardi (5F-rasm). KpOMV larning makrofaglarda umumiy antiviral reaktsiyaga sabab bo'ladimi yoki yo'qligini tekshirish uchun hujayralar nazorat hujayralarida ko'payadigan vezikulyar stomatit virusi (VSV) bilan kasallangan, ammo KpOMV bilan oldindan ishlangan hujayralarda bloklangan va TRIFni o'chirish orqali ham qutqarilishi mumkin edi (1-rasm). 5G). TLR4 orqali LPSni tanib olish endotsitoz va TRIF-faollashuv uchun zarur bo'lganligi sababli, OMV yuzasidagi LPS lipopeptid antibiotiki Polimiksin B (PB) tomonidan neytrallashtirildi, natijada Mx1 induksiyasi 50% ga kamaydi (6A+B-rasm va 1-qo'shimcha fayl). : S6C), lekin NF-kB ga bog'liq CXCL8 transkripsiyasida sezilarli farq yo'q (6C-rasm). Virusli replikatsiya KpOMV + PB oldindan stimulyatsiyasida bazal darajaga qadar qutqarildi (6D-rasm). PB tomonidan LPS tan olinishini inhibe qilish Mx1 ni to'liq blokirovka qilish uchun etarli bo'lmaganligi sababli, endotoksinsiz Clear coli (Cc) dan OMVlar ajratilgan va oldindan stimulyatsiya qilish uchun ishlatilgan. Cc o'zgartirilgan A lipidini ifodalaydi va faollashtirilgan TLR4/MD2 kompleksini keltirib chiqara olmaydi [24]. CcOMVs Mx1 ni induktsiya qilmadi (6A+B-rasm va 1-qo'shimcha fayl: S6C) va makrofaglarda IAV replikatsiyasini kamaytirmadi (6D-rasm). Ma'lumki, differensial ultratsentrifugalash orqali hujayradan tashqari pufakchalarni izolyatsiya qilish pufakchalar bilan birga ifloslantiruvchi moddalarni (masalan, oqsillar yoki bakterial hujayra qo'shimchalari) birgalikda izolyatsiyasiga olib keladi. MISEV2018 ko'rsatmalariga [25] muvofiq, asosiy tajribalar ultrafiltratsiya (UF) va o'lchamni istisno qilish xromatografiyasi (SEC) kombinatsiyasi orqali ajratilgan OMVlar bilan takrorlandi. THP{64}} reportyor hujayralarini UF-SEC bilan tozalangan KpOMVlar bilan stimulyatsiya qilish Mx1 (Qo'shimcha fayl 1: S8A-rasm) va IRF reportyorining (S8B-rasm) induksiyasiga olib keldi, shu bilan birga u TRIF−/− makrofaglarida yo'qolgan. 1-qo'shimcha fayl: S8A+B-rasm). IAV replikatsiyasi KpOMV bilan oldindan ishlangan hujayralarda bloklandi va TRIF o'chirilgandan so'ng qutqarildi (Qo'shimcha fayl 1: S8C-rasm). NF-kB muxbiri faoliyati hujayralarning TRIF holatidan qat'i nazar, KpOMVlar tomonidan qo'zg'atildi (Qo'shimcha fayl 1: S8D-rasm).
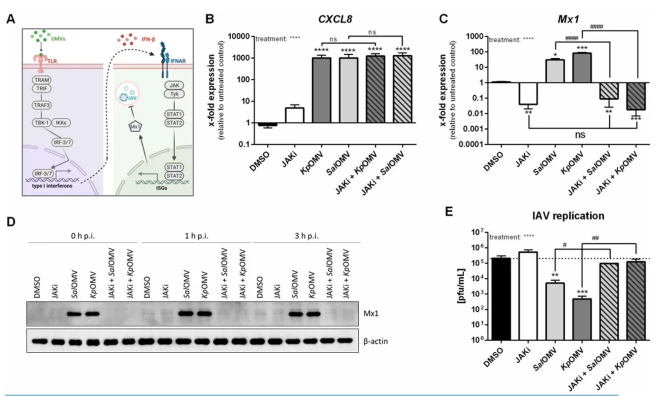
4-rasm JAK signalini inhibe qilish gripp A virusining makrofaglarda replikatsiyasini qutqaradi. OMV makrofaglarda TRIF-IRF-signalizatsiyasini faollashtiradi, bu esa o'z navbatida IFN- ifodasini induktsiya qiladi va keyingi IFNAR-signallari bilan ajralib chiqadi. IFNAR JAK/STAT orqali signal beradi va ISG ifodasini induktsiya qiladi, ulardan biri Mx1. Bu IAV replikatsiyasi blokiga olib keladi. B–E THP-1 xujayralari 2{{22} uchun OMV (1 mkg/ml; Kp/Sal) qo‘shilishidan oldin 1 0 mkM JAK inhibitori (JAKi) bilan 1 soat oldindan inkubatsiya qilindi. }} h. B-C CXCL8 (B) va Mx1 (C) ifodasi qPCR tomonidan aniqlandi va natijalar RPS18 ga normallashtirildi va ishlov berilmagan nazoratga nisbatan tasvirlangan. Barlar uchdan to'rttagacha mustaqil tajriba + SEMning o'rtacha qiymatlarini ko'rsatadi. D + E OMV oldindan davolash qilingan hujayralar qo'shimcha ravishda IAV (MOI 0.001) bilan yuqtirildi. D Western blot infektsiyadan keyingi 0-3 soatda Mx1 oqsili ifodasini ko'rsatadi (pi). E Virusli replikatsiya infektsiyadan 24 soat o'tgach blyashka tahlili bilan aniqlandi. Barlar to'rtta mustaqil tajriba + SEMning o'rtacha qiymatlarini ko'rsatadi. Statistika: 1-yo'l ANOVA (B+C+E); *p<0.05, **p<0.01, ***p<0.001, ****p<0.0001; *compared to DMSO control, # as depicted in the graph; ns=not significant; n=4

5-rasm OMVlar TRIF orqali makrofaglarda antiviral signalni keltirib chiqaradi. THP-1 Dual reportyor hujayralari NF-kB yo'li faollashgandan so'ng ajratilgan embrion ishqoriy fosfataza (SEAP) va IRF yo'li faollashganda Lucia lusiferaza ifodasi va sekretsiyasini keltirib chiqaradi. Bundan tashqari, TRIF (kulrang chiziqlar) farqlanadi va keyinchalik -/− hujayralar bilan rag'batlantiriladi, TRIF adapter molekulasining barqaror nokautiga ega. (BF) THP-1 reportyor hujayralari (=Ikki; qora chiziqlar) va TRIF−/− hujayralar KpOMV (1 µg/ml) 20 soat davomida yoki nazorat qilish uchun ishlov berilmagan holda qoldirilgan. Belgilangan vaqtdan so'ng supernatant, RNK va/yoki oqsillar yig'ildi. B vakili Western Blot Mx1 protein ifodasi tasviri. C+D Lucia muxbiri faoliyati (C) va SEAP muxbiri faoliyati (D) hujayra madaniyati supernatantida aniqlandi. Ikkala muxbirning faolligini aniqlash uchun bir xil supernatant ishlatilgan. E STAT- va NF-kB-ga bog'liq maqsadli genlar uchun nisbiy mRNK ifodasi (yuqoridan pastga: IFIT1, IFI44, Mx1, CXCL8) qPCR tomonidan aniqlandi va natijalar RPS18 ga normallashtirildi va ogohlantirilmagan Dual nazoratga nisbatan tasvirlangan. Qatlamdagi o'zgarishlar log2 o'zgartirildi. Hujayralar qo'shimcha ravishda A/WSN/33(H1N1) (MOI 0.1) 24 soat (F) yoki VSV (MOI 0,1) 12 soat (G) bilan qo'shimcha ravishda infektsiyalangan. Virusning ko'payishi blyashka tahlili bilan aniqlandi. Chiziqlar to'rtta (C–F) dan fve (G) gacha mustaqil tajribalar + SEMning o'rtacha qiymatlarini ko'rsatadi. Statistika: 2-yo'l ANOVA (C–G); *p<0.05, **p<0.01, ****p<0.0001; * compared to unstimulated Dual control, # as depicted in the graph; ns=not signifcant; n=4–5
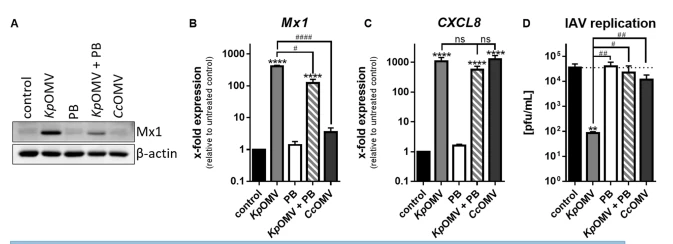
6-rasm OMV tomonidan qo'zg'atilgan Mx1 ifodasi LPS inhibisyonidan keyin yo'qoladi. THP{3}} xujayralari 2{18}} soat davomida OMV (1 mkg/ml; Kp yoki Clear coli (Cc)) bilan yolg‘iz yoki 20 mkg/ml Polimiksin B (PB) bilan birgalikda inkubatsiya qilindi yoki ishlov berilmagan holda qoldirildi. nazorat qilish uchun. Mx1 protein ifodasi Western Blot tomonidan aniqlandi. Uchta biologik mustaqil tajribaning vakili natijasi ko'rsatilgan. Mx1 B va CXCL8 C ifodasi qPCR tomonidan aniqlandi. Barlar to'rtta mustaqil tajriba + SEMning o'rtacha qiymatlarini ko'rsatadi. D THP{11}} xujayralari 20 soat davomida OMV (1 mkg/ml; Kp yoki Cc) bilan yakka tartibda yoki 20 mkg/ml PB bilan birgalikda inkubatsiya qilindi yoki nazorat qilish uchun davolanmasdan qoldiriladi va keyin qo‘shimcha ravishda A/WSN/33 bilan yuqtiriladi. (H1N1) (MOI 0,001). Virusning replikatsiyasi infektsiyadan 24 soat o'tgach blyashka tahlili bilan aniqlandi. Barlar to'rtta mustaqil tajriba + SEMning o'rtacha qiymatlarini ko'rsatadi. Statistika: 1-yo'l ANOVA B–D; *p<0.05, **p<0.01, ****p<0.0001; *compared to control, #compared to KpOMV; ns=not significant; n=3–4
OMVlarning IAV replikatsiyasini inhibe qiluvchi ta'siri AEClarga o'tkazilishi mumkin
Makrofaglar o'pkada IAV replikatsiyasi uchun asosiy hujayra turi emasligi va IFN I ham parakrin ta'sir ko'rsatadiganligi sababli, IAV replikatsiya ta'sirining AECga o'tkazuvchanligi sinovdan o'tkazildi, chunki bu hujayralar makrofaglardan farqli o'laroq, OMV / MV larga bevosita javob bermaydi ( Qo'shimcha fayl 1: S9-rasm). KpOMV bilan ishlangan makrofaglardan olingan supernatant (SN) LpOMV-SN dan farqli o'laroq, A549 hujayralarida Mx1 ni keltirib chiqardi (7A-rasm), CXCL8 esa ikkalasidan keyin (7B-rasm). KpOMVSN virus replikatsiyasini kamaytirdi (7C-rasm), bu makrofag tajribalari va Mx1 induktsiyasining naqshiga mos keldi. Kuzatilgan IAV cheklovchi ta'sirining JAK/STAT-signalizatsiyasiga bog'liqligini tasdiqlash uchun KpOMV-SN JAKi bilan birlashtirilib, KpOMV-SN-davolashda Mx1 induksiyasini blokirovka qildi (7A-rasm) va IAV replikatsiyasini tikladi (7C-rasm). O'pkada immun jarayonlarni murakkab tartibga solishga taqlid qilish uchun insonning aniq kesilgan o'pka bo'laklarining (PCLS) ex vivo IAV infektsiyasi o'rnatildi. Lp / KpOMVlar PCLS uchun sitotoksik emas edi (8A-rasm) va OMV oldindan stimulyatsiyasi va IAV infektsiyasining kombinatsiyasi Mx1 induksiyasiga olib keldi (8B-rasm) va CXCL10 chiqarilishi (8C-rasm). KpOMVs, lekin LpOMV emas, PCLSda IAV replikatsiyasini sezilarli darajada kamaytirdi (8D-rasm). Kuzatilgan ta'sirlar ultrabinafsha nurlanishi bilan inaktivatsiyalangan IAV infektsiyasi bilan bekor qilindi (8A-C-rasm). Bizning topilmalarimiz o'pka yallig'lanishi modeliga olib keladi, bunda AMlar IFN I induktsiyasi bilan gramm-manfiy bakteriyalarning OMVlariga javob beradi, AMlarda avtokrin tarzda va AEClarda in vitro va ex vivo PCLS modelida parakrin tarzda antiviral javoblarni keltirib chiqaradi. (8E-rasm).
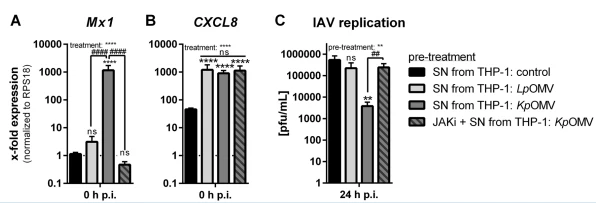
7-rasm Gripp A virusi replikatsiyasini inhibe qiluvchi OMV ta'siri AEKlarga o'tkazilishi mumkin. THP-1 xujayralari LpOMV yoki KpOMV bilan 20 soat davomida inkubatsiya qilingan yoki nazorat qilish uchun ishlov berilmagan. Supernatant (SN) steril filtrlangan va 20 soat yolg'iz yoki 10 mkM JAKi bilan birgalikda A549 hujayralarini oldindan stimulyatsiya qilish uchun ishlatilgan. A + B Mx1 (A) va CXCL8 B ifodasi infektsiya vaqtida (0 h pi) qPCR tomonidan aniqlandi. Chiziqlar to'rtta mustaqil tajribaning o'rtacha qiymatlarini ko'rsatadi + SEM ishlov berilmagan nazorat hujayralari uchun normallashtirilgan. C Oldindan davolangan A549 xujayralari 24 soat davomida A/Gamburg/5/2009 (H1N1pdm) (MOI 0.01) gripp virusi bilan qo'shimcha ravishda infektsiyalangan. Virusning ko'payishi blyashka tahlili bilan aniqlandi. Barlar to'rtta mustaqil tajriba + SEMning o'rtacha qiymatlari. Statistika: 1-yo'l ANOVA; **s<0.01, ****p<0.0001; * compared to control-SN; # compared to KpOMV-SN; n=4
Munozara
Biz turli bakteriyalardan vesikulalar makrofaglarda differensial signalni keltirib chiqarishini aniqladik, bu keyingi infektsiyada IAV replikatsiyasini cheklashga qodir. Adabiyotga muvofiq, Lp, Kp, Ec va Saldan ajratilgan OMVlar va Sp dan MVlar o'lchamlari bilan solishtirish mumkin edi [26-28]. Bakterial pufakchalar bilan inkubatsiya qilingan makrofaglar sitotoksiklikni ko'rsatmadi [29, 30], ammo yallig'lanishga qarshi javobni keltirib chiqardi. Barcha vesikulalar p38 fosforlanishini va CXCL8 va IL -1 ning birlamchi inson makrofaglaridan chiqarilishini qo'zg'atdi, shu bilan birga IFN I induktsiyasida va ularning quyi oqim signalida farqlar mavjud edi. Biz va boshqalar allaqachon TLR2 [12, 22] orqali LpOMV signallari va SpMVlar makrofaglarda aniq faollashuv naqshini keltirib chiqarishini ko'rsatdik [31]. LpOMVs/SpMVs kelib chiqqan bakteriyalar uchun ta'riflanganidek, yallig'lanishga qarshi NF-kB maqsadli genlarini faollashtirdi [12, 22, 31]. Shunga qaramay, Kp/Ec/SalOMVlarning tan olinishi NF-kB maqsadli genlaridan tashqari, quyi oqimdagi IFNB ifodasi bilan IRF{18}} fosforillanishini va STAT1 ning uzoq davom etadigan fosforillanishini hamda ISGlarning induksiyasini qo‘zg‘atdi. IFNAR-JAK/STAT signalizatsiyasi. OMVlar o'z yuzasida LPSni olib yuradi, ammo OMVlarning yallig'lanishga qarshi qobiliyatini sof LPS bilan taqlid qilib bo'lmaydi. Biz va boshqalar makrofaglar bir xil miqdordagi sof LPS bilan solishtirganda OMVlarga nisbatan sezgirroq ekanligini kuzatdik [32, 33]. OMVlar mustahkam immunitet reaktsiyasini keltirib chiqarish uchun zarur bo'lgan immun agonistlarning yig'indisini o'z ichiga oladi [32]. Tijoriy TLR va RIG-I agonistlari yolg'iz yoki LPS bilan birgalikda ta'sirni taqlid qila olmaydi. Ilgari LPS yuklangan lipozomalar erkin LPS bilan solishtirganda makrofaglarda TRIF-IRF-3 ning uzoqroq faollashuvini keltirib chiqarishi isbotlangan [34]. TRIF−/− makrofaglaridan foydalanib, biz ISG induksiyasining ushbu adapter molekulasiga bog‘liqligini ko‘rsatdik. Bundan tashqari, LPSmasking PB bilan birlashtirilgan endotoksinsiz CcOMV yoki OMV makrofaglarning javobini bekor qilish uchun etarli edi. Bu keyingi endositoz va TRIF signalizatsiyasi bilan TLR4 orqali OMVlarning tan olinishini ko'rsatadi. Shunga ko'ra, Kp / Ec / SalOMV'lar TLR4 orqali makrofaglarning yallig'lanishga qarshi faollashuvini keltirib chiqara oldi, bu MyD88 signalizatsiyasi va NF-kB ga bog'liq gen ekspressiyasiga, shuningdek, IFN I javobi bilan TRIF signalizatsiyasiga olib keldi. Bu sichqonlarda Neisseria meningitidis OMVlarining immunogenligi uchun TLR4 va TRIF birgalikda zarurligini ko'rsatadigan adabiyotlarga mos keladi [35]. I turdagi IFNlar antiviral javoblarning asosiy regulyatorlari bo'lganligi sababli, biz Kp/Ec/SalOMVlarning tan olinishi IAV replikatsiyasiga ta'sir qiladi, deb faraz qildik. Biz makrofaglar TRIF-faollashtiruvchi OMV-dan oldingi muolajalardan so'ng IAV va VSV replikatsiyasini samarali tarzda blokirovka qilganini, TRIF-/- virusli replikatsiyani saqlab qolganligini ko'rsatdik. IFNAR signalizatsiyasiga ta'sirini aniqlash uchun JAK1/2 inhibisyoni OMVlar bilan birgalikda STAT{44}}bog'liq Mx1 induktsiyasini muvaffaqiyatli blokladi va makrofaglarda virus replikatsiyasini saqlab qoldi. KpOMVlarning PB bilan kombinatsiyasi yoki endotoksinsiz CcOMVlarni qo'llash makrofaglarda IAV replikatsiyasini kamaytirmadi, chunki ular antiviral genlarni qo'zg'atishga qodir emas edi. Ultratsentrifugalash orqali olingan hujayradan tashqari pufakcha preparatlari pufakchalar bilan bir qatorda erkin oqsil va bakterial hujayra birikmalarini o'z ichiga olganligi sababli, OMV preparatlari qo'shimcha ravishda ultrafiltratsiya va o'lchamni istisno qilish xromatografiyasi kombinatsiyasi orqali ishlab chiqarilgan [25].

Xitoy o'ti cistanche o'simligi - Antitumor
Olingan sof pufakchali preparatlar quyi oqim Mx1 induktsiyasi bilan TRIF-IRF signalizatsiyasini teng darajada qo'zg'atishga qodir edi va to'g'ridan-to'g'ri pufakchalar ta'sirini ko'rsatuvchi virus replikatsiyasini blokladi. Garchi bankomatlar o'pkada birinchi himoya chizig'i bo'lsa-da, IAV infektsiyasining ko'pchiligi va inson o'pkasida replikatsiya AEClarda sodir bo'ladi [36]. Shuning uchun AEClar OMVlar bilan rag'batlantirildi, ammo ular makrofaglar kabi stimulyatsiyaga javob bermadi. Faqat bronxial epitelial hujayra liniyasi BEAS2B CXCL8 ifodasi bilan javob berdi, lekin Mx1 induksiyasi yo'q edi. Makrofaglarda TLR4 va TRIF ga bog'liq antiviral gen ifodasini ko'rsatishimiz mumkin bo'lganligi sababli, biz to'rtta sinovdan o'tgan epitelial hujayra chizig'i makrofaglar kabi TLR4 ni ifodalamaydi va ular TLR4 faollashganda OMVlarni endotsitozlay olmagan deb taxmin qilamiz. Bu izolyatsiya qilingan inson AEClari juftlashgan AMlar kabi LPSga javob bermasligini ko'rsatadigan adabiyotlarga mos keladi [37]. OMV ni oldindan inkubatsiya qilishda antiviral holatni IFN I bilan bog'laganimizdek, biz AEClarni oldindan rag'batlantirish uchun OMV bilan stimulyatsiya qilingan makrofaglarning supernatantidan foydalandik. KpOMV bilan stimulyatsiya qilingan makrofaglarning shartli muhiti, to'g'ridan-to'g'ri vesikulyar stimulyatsiyadan farqli o'laroq, bu hujayralarda Mx1 ifodasini keltirib chiqardi va keyingi infektsiya tajribalarida IAV replikatsiyasini kamaytirdi. LpOMV bilan ishlangan makrofaglardan olingan supernatant epiteliya hujayralarida CXCL8 ni qo'zg'atdi, ammo Mx1 induksiyasiga va virus replikatsiyasida o'zgarishlarga olib kelmadi. Shartli muhitda kuzatilgan ta'sirni IFN I bilan bog'lash uchun supernatant Mx1 induksiyasini blokirovka qiluvchi JAK1/2 inhibitori bilan birlashtirildi va virus replikatsiyasiga ta'sir qilmadi. Inson o'pkasidagi turli xil hujayralar turlarining o'zaro ta'siri ancha murakkab va shartli muhit tomonidan to'liq taqlid qilib bo'lmaydiganligi sababli, biz o'zimizning o'pkaning distal to'qimalarining yashovchan bo'limlariga yondashuvimizni kengaytirdik, bu esa xost-patogen o'zaro ta'sirini o'rganish uchun keng qo'llaniladi. gripp virusi va bakterial infektsiyalar [38-41]. Qo'llaniladigan in vitro modellardan farqli o'laroq, ex vivo inson o'pka to'qimasi o'pkaning uch o'lchovli arxitekturasini saqlab qoladi va o'pkada yashovchi hujayralar turlari o'rtasida fiziologik o'zaro ta'sir o'tkazishga imkon beradi, ammo u keyingi ishga olingan immunitet hujayralarining kirib kelishi ehtimoli yo'q. KpOMV bilan stimulyatsiya qilingan PCLS ning IAV bilan ketma-ket infektsiyasi oldindan davolanmagan nazorat bilan solishtirganda virus yukini kamaytirdi. In vitroda sinovdan o'tgan barcha AEClar to'g'ridan-to'g'ri bakterial vesikula stimulyatsiyasiga javob bermaganligi sababli, biz ushbu ex vivo modelida AM lar asosiy javob beruvchi hujayra turi deb taxmin qilamiz. Keyingi infektsiya uchun faqat AEKlarda yuqadigan va ko'payadigan gripp izolati tanlanganligi sababli, bu AM dan kelib chiqqan va AEK larga uzatiladigan parakrin antiviral ta'sir deb taxmin qilish mumkin. Bu erda olingan ma'lumotlarga asoslanib, biz quyidagi modelni taklif qilamiz (8E-rasm): Gram-manfiy bakteriyalardan olingan OMVlar klassik yallig'lanishga qarshi usulda inson makrofaglarini faollashtirishi va muvaffaqiyatli endositozdan so'ng ularni TLR4 va TRIF orqali antiviral tarzda faollashtirishi mumkin. pufakchalar. IFN I chiqarilishi o'z navbatida IFNAR va JAK/STAT signalizatsiyasi orqali makrofaglar va/yoki AEClarni virusga qarshi ta'sir ko'rsatishi mumkin. Bu hujayralarning keyingi infektsiyasi virus yukining Mx1-vositaviy kamayishiga olib keladi. Bizda asosiy inson AM lariga kirish imkonimiz bo'lmaganligi sababli, tajribalar namuna sifatida inson BDMlari yordamida amalga oshirildi. Ushbu makrofaglarning turli xil rivojlanish kelib chiqishi va astarlanishini hisobga olsak, AMlar BDMlardan farqli o'laroq, zaifroq yallig'lanishga qarshi javob ko'rsatishi mumkin. Bakterial pufakchalar allaqachon turli xil pnevmoniya qo'zg'atuvchi patogenlarga qarshi emlash strategiyalarida qo'llaniladi ([42] da ko'rib chiqilgan). Shunday qilib, OMVlar nafaqat o'zlarining xos bakteriyalariga qarshi potentsial tizimli emlash strategiyalari uchun vositadir, balki mahalliy immunitet hujayralarini faollashtirish orqali virusli infektsiyalarga qarshi kurashish uchun ham foydalanish mumkin. Bu in vitro topilmalar boshqa virusli patogenlarga tegishli yoki yo'qligini tekshirish uchun kelajakda in vivo tadqiqotlar o'tkazish kerak. Bundan tashqari, shuni ta'kidlash kerakki, yuzaga kelishi mumkin bo'lgan endotoksik javobni in vivo jonli ravishda oshirib yuborilgan immunitet reaktsiyalarining oldini olish uchun tanqidiy nazorat qilish kerak. I turdagi IFN induktsiyasini qattiq nazorat qilish kerak, chunki sog'lom odamlarda TLR7 agonistini inhalatsiyalash birinchi dozadan keyin yaxshi muhosaba qilingan, ammo TNF va IFN I reaktsiyasining kuchayishi va grippga o'xshash simptomlarga olib kelishi ko'rsatilgan. , ikkinchi dozadan keyin [43]. Salbiy ta'sirlarga qarshi kurashish uchun muvozanatli immunitet reaktsiyasini keltirib chiqaradigan va yaxshi qo'llanilishiga erishish uchun OMVlarning genetik jihatdan o'zgartirilgan versiyalari kerak bo'lishi mumkin. Birgalikda biz bu erda OMVlar inson makrofaglarida antiviral signalni qanday qo'zg'atishi mumkinligi va bu IAV replikatsiyasining oldini olish uchun qanday ishlatilishi mumkinligi haqidagi modelni taqdim etamiz.
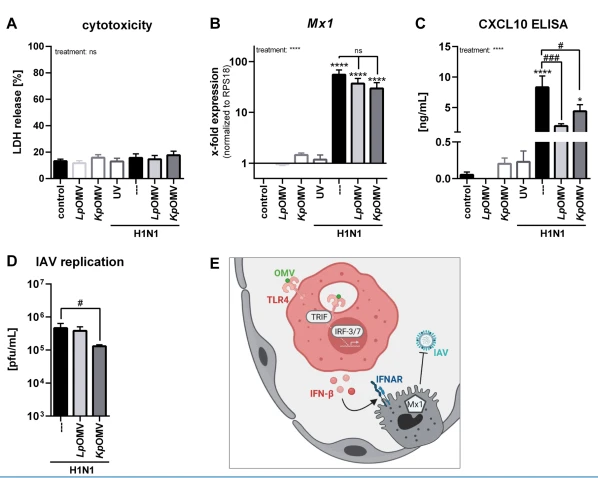
8-rasm KpOMV gripp A virusining insonning aniq kesilgan o'pka bo'laklarida replikatsiyasini kamaytiradi. Inson PCLS 20 soat davomida 1 µg/ml OMV (Lp/Kp) bilan inkubatsiya qilindi va keyin 48 soat davomida A/California/04/2009 (H1N1pdm) grippi bilan qo'shimcha ravishda yuqtirildi. Virusning UV inaktivatsiyasi nazorat vazifasini o'tadi. Sitotoksiklik PCLS dan chiqarilgan LDH miqdorini aniqlash orqali aniqlandi va umumiy liziz bilan solishtirganda% bilan tasvirlangan. B Mx1 ifodasi qPCR yordamida aniqlangan va RPS18 va ishlov berilmagan nazorat PCLS ga nisbatan taqdim etilgan. C CXCL10 chiqarilishi Elishay tomonidan aniqlangan va ng/ml da tasvirlangan. D Virusli replikatsiya blyashka tahlili bilan aniqlangan va pfu/ml da tasvirlangan. Barlar uchdan beshgacha biologik replikatsiyalar + SEMning o'rtacha qiymatlarini ko'rsatadi. E O'pkada OMV ning antiviral immunitetini induktsiya qilish uchun taklif qilingan model. Statistika: 1-way ANOVA (AC), Fridman-test (D); *p<0.05, ***p<0.001, ****p<0.0001; * compared to IAV infected, but not pre-treated PCLS, # as depicted in the graph; ns=not significant; n=5
Ma'lumotnomalar
1. Kulp A, Kuehn MJ. Sekretsiya qilingan bakterial tashqi membrana pufakchalarining biologik funktsiyalari va biogenezi. Annu Rev Mikrobiol. 2010;64:163–84.
2. Ellis TN, Kuehn MJ. Bakterial tashqi membrana pufakchalarining virulentligi va immunomodulyatsion roli. Microbiol Mol Biol Rev. 2010;74(1):81–94.
3. Giordano NP, Cian MB, Dalebroux ZD. Tashqi membranadagi lipid sekretsiyasi va gram-manfiy bakteriyalarga tug'ma immunitet reaktsiyasi. Immunni yuqtirish. 2020. https://doi.org/10.1128/IAI.00920-19.
4. Mancini F va boshqalar. OMV vaktsinalari va immun javobda TLR agonistlarining roli. Int J Mol Sci. 2020. https://doi.org/10.3390/ijms21124416.
5. Xu G, Kristman JV. Tahririyat: o'pkaning yallig'lanishi va rezolyutsiyasida alveolyar makrofaglar. Old immunol. 2019;10:2275.
6. Grassin-Delyle S va boshqalar. Inson o'pkasi makrofaglari tomonidan sitokinlarni ishlab chiqarishda to'lovga o'xshash retseptorlarning roli. J Tug'ma immunitet. 2020;12(1):63–73.
7. Gripp (mavsumiy) haqida ma'lumot varaqasi. 2018; https://www.who.int/news-room/ fact-sheets/detail/influenza-(mavsumiy)
8. Crotta S va boshqalar. I va III turdagi interferonlar gripp bilan kasallangan havo yo'llari epiteliyasida transkripsiya belgisini qo'zg'atish uchun ortiqcha kuchaytiruvchi halqalarni harakatga keltiradi. PLoS patogi. 2013;9(11): e1003773.
9. Bals R, Hiemstra PS. O'pkada tug'ma immunitet: epiteliya hujayralari nafas olish patogenlariga qarshi qanday kurashadi. Eur Respir J. 2004;23(2):327–33.
10. Helft J va boshqalar. O'zaro ta'sir qiluvchi CD103+ dendritik hujayralar gripp virusi infektsiyasidan himoyalangan. J Clin Invest. 2012;122(11):4037–47.
11. Ghoneim HE, Tomas PG, McCullers JA. Gripp infektsiyasi paytida alveolyar makrofaglarning kamayishi bakterial superinfektsiyani osonlashtiradi. J Immunol. 2013;191(3):1250–9.
12. Jung AL va boshqalar. Legionella pneumophila-dan olingan tashqi membrana pufakchalari makrofaglarda bakteriyalarning ko'payishiga yordam beradi. PLoS patogi. 2016;12(4): e1005592.
13. Lindhauer NS va boshqalar. Streptococcus pneumoniae in vitro infektsiyasi modelida Tribolium castaneum defen-sinning antibakterial faolligi. Virulentlik. 2019;10(1):902–9.
14. Danov O va boshqalar. Sigaret tutuni dendritik hujayralar populyatsiyasiga, epiteliya to'siqlari funktsiyasiga va H1N1 bilan virusli infektsiyaga qarshi immunitetga ta'sir qiladi. Front Med. 2020. https://doi.org/10.3389/fmed.2020.571003.
15. Matrosovich M va boshqalar. Virusli blyashka tahlillari uchun yangi past viskoziteli qoplamali vosita. Virol J. 2006;3:63. 16. Neuhaus V va boshqalar. Insonning aniq kesilgan o'pka bo'laklarida moddalarning sitotoksik va immunomodulyatsion ta'sirini baholash. J Vis Exp. 2018. https://doi.org/10.3791/57042. 17. Niehof M va boshqalar. Turli turlardan aniq kesilgan o'pka bo'laklaridan (PCLS) RNK izolyatsiyasi. BMC Res eslatmalari. 2017;10(1):121.
18. Schulz C va boshqalar. THP{1}}olma makrofaglar o'pka epitelial hujayralarini Legionella pneumophila - tizim biologiyasi tadqiqotiga gipo-reaktiv qiladi. Sci Rep. 2017;7(1):11988.
19. Livak KJ, Shmittgen TD. Haqiqiy vaqtda miqdoriy PCR va 2 (-Delta Delta C (T)) usuli yordamida nisbiy gen ifodasi ma'lumotlarini tahlil qilish. Usullari. 2001;25(4):402–8. https://doi.org/10.1006/meth.2001.1262.
20. Haller O va boshqalar. Mx GTPases: tug'ma immunitetning dinaminga o'xshash antiviral mashinalari. Mikrobiol tendentsiyalari. 2015;23(3):154–63. 21. Anastasiya M va boshqalar. A/WSN/1933(H1N1) grippi virusining NS1 oqsilining C terminali yuqtirgan odam makrofaglari va sichqonlarida virusga qarshi javoblarni modulyatsiya qiladi. J Gen Virol. 2015;96(8):2086–91.
22. Jager J va boshqalar. Legionella pneumophila tashqi membrana pufakchalarining eukaryotik membrana tizimlari bilan birlashishi patogen omillarni hujayra membranalariga etkazib berish mexanizmidir. Hujayra mikrobiol. 2015;17(5):607–20.
23. Lammers AJ va boshqalar. Taloq yo'qligida pnevmokokk pnevmoniyaga xostning javobida TLR2 ning roli. BMC Infect Dis. 2012. https://doi. org/10.1186/1471-2334-12-139.
24. Mamat U va boshqalar. Endotoksinsiz protein ishlab chiqarish — ClearColi™ texnologiyasi. Nat usullari. 2013;10:916.
25. Thery C va boshqalar. Hujayradan tashqari pufakchalarni o'rganish uchun minimal ma'lumot 2018 (MISEV2018): Xalqaro hujayradan tashqari vesikulalar jamiyatining pozitsiyasi va MISEV2014 ko'rsatmalarining yangilanishi. J hujayradan tashqari pufakchalar. 2018;7(1):1535750. https://doi.org/10.1080/20013078.2018. 1535750. 26. Bonnington KE, Kuehn MJ. Tashqi membrana pufakchalarini ishlab chiqarish atrof-muhitga o'tish davrida lps remodelingini va salmonellalarda tashqi membranani saqlashni osonlashtiradi. MBio. 2016. https://doi.org/10.1128/mBio. 01532-16.
27. Jasim R va boshqalar. Juftlangan polimiksinga sezgir va chidamli klebsiella pneumoniae klinik izolatlaridan tashqi membrana pufakchalarining lipidomik tahlili. Int J Mol Sci. 2018. https://doi.org/10.3390/ijms19082356.
28. Olaya-Abril A va boshqalar. Streptococcus pneumoniae tomonidan ishlab chiqarilgan himoya hujayradan tashqari membranadan kelib chiqqan pufakchalarning xarakteristikasi. J Proteomika. 2014;106:46–60.
29. Kuhn T, Koch M, Fuhrmann G. Probiomimetika - yangi laktobakteriyalarni taqlid qiluvchi mikropartikullar oshqozon-ichak modellarida yallig'lanishga qarshi va to'siqni himoya qiluvchi ta'sir ko'rsatadi. Kichik. 2020;16(40): e2003158.
30. Mehanny M va boshqalar. Streptokokk hujayradan tashqari membrana pufakchalari immun hujayralar tomonidan tezda ichkariga kiradi va ularning sitokin chiqarilishini o'zgartiradi. Old immunol. 2020;11:80.
31. Volgers C va boshqalar. Makrofag infektsiyasi paytida THP-1 makrofaglari va nafas olish patogenlari tomonidan chiqariladigan membrana pufakchalari uchun immunomodulyator roli. BMC Microbiol. 2017;17(1):216.
32. Ellis TN, Leiman SA, Kuehn MJ. Pseudomonas aeruginosa dan tabiiy ravishda hosil bo'lgan tashqi membrana pufakchalari lipopolisakkarid va oqsil komponentlarini birgalikda sezish orqali kuchli tug'ma immunitet reaktsiyasini keltirib chiqaradi. Immunni yuqtirish. 2010;78(9):3822–31.
33. Alaniz RC va boshqalar. Membran pufakchalari Salmonella typhimuriumning immunogen faksimillari bo'lib, ular dendritik hujayralarni, asosiy B va T hujayralari javoblarini faol ravishda faollashtiradi va in vivo jonli ravishda himoya immunitetini rag'batlantiradi. J Immunol. 2007;179(11):7692–701.
34. Vatanabe S, Kumazawa Y, Inoue J. Liposomal lipopolisakkarid CD14 dan mustaqil ravishda TRIFga bog'liq signalizatsiya yo'lini boshlaydi. PLoS ONE. 2013;8(4): e60078.
35. Fransen F va boshqalar. TLR2 va TLR4 ning Neisseria meningitidis yoki Bordetella pertussisga qarshi vaktsina bilan emlashdan so'ng immun javobiga differentsial ta'siri. PLoS ONE. 2010;5(12): e15692.
36. Travanty E va boshqalar. Inson o'pkasining asosiy hujayralarining H1N1 gripp viruslariga differentsial sezuvchanligi. J Virol. 2015;89(23):11935–44.
37. Muborak RA va boshqalar. Odamning birlamchi nafas yo'llarining epitelial hujayralari va alveolyar makrofaglarida yallig'lanishga qarshi va yallig'lanishga qarshi javoblarni taqqoslash. Respir Res. 2018;19(1):126.
38. Wu W va boshqalar. Inson o'pka organi madaniyati modelida H3N2 va H1N1 infu-enza virusi infektsiyasiga tug'ma immunitet reaktsiyasi. Virusologiya. 2010;396(2):178–88.
39. Wu W va boshqalar. A(H1N1)pdm09 grippi virusi inson o'pkasida RIG-I tomonidan boshlangan tug'ma antiviral javoblarni bostiradi. PLoS ONE. 2012;7(11): e49856.
40. Delgado-Ortega M va boshqalar. Yangi tug'ilgan cho'chqa traxeya hujayralarida, alveolyar makrofaglarda va aniq kesilgan o'pka bo'laklarida H3N2 kichik tipdagi cho'chqa grippi virusiga tug'ma immunitet reaktsiyasi. Veterinar Res. 2014;45:42.
41. Kolbe U va boshqalar. Sichqonchaning aniq kesilgan o'pka bo'laklarida pseudomonas aeruginosa infektsiyasida sitokinning erta induktsiyasi bakteriya hayotiyligini sezishga bog'liq. Old immunol. 2020. https://doi.org/10.3389/fmmu. 2020.598636.
42. Jung AL va boshqalar. Pnevmoniyadagi xost va bakterial kelib chiqadigan hujayradan tashqari pufakchalarning klinik roli. Adv Drug Deliv Rev. 2021. https://doi.org/10. 1016/j.addr.2021.05.021.
43. Delaney S va boshqalar. Selektiv TLR7 agonisti, AZD8848 inhalatsiya dozasidan keyin odamda bardoshlik. BMJ Open Respir Respir. 2016;3(1): e000113.


